生态学、进化与系统学年评:代谢缩放如何揭示生命的规模法则
原创 郭瑞东 2026-11-11 14:30 日本
从细胞到生物圈,代谢缩放揭示生命的规模法则
导语
为什么大象的体重远超小鼠,单位体重消耗的能量却更少?为什么动物的血管与植物的枝叶,呈现出相似的分支结构?这些现象背后,是生命获取、运输和分配资源时面临的共同约束。2026年9月29日发表于 Annual Review of Ecology, Evolution, and Systematics 的一篇从细胞延伸至生物圈的综述,重新梳理了代谢缩放理论(MST):它不仅解释代谢率为何常随体重的四分之三次幂增长,更试图预测这一规律何时、为何发生偏离。从网络几何到生活史,从个体生长到生态系统能量流,幂律及其偏离共同揭示了物理约束与进化选择如何塑造生命的多样性。
关键词:幂律法则、代谢缩放理论(Metabolic Scaling Theory,MST)、异速缩放、生物代谢

郭瑞东丨作者
赵思怡丨审校
论文题目:From Cells to the Biosphere: The Expanding Role of Metabolic Scaling Theory in Biology
论文链接:https://www.annualreviews.org/content/journals/10.1146/annurev-ecolsys-102924-040423
发表时间:2026年9月29日
论文来源:Annual Review of Ecology, Evolution, and Systematics
代谢缩放需要基于物理的结构性解释
代谢缩放需要基于物理的结构性解释
探索生物体的功能规律时,我们往往首先想到生化反应,但生命的运行也受到物理定律的约束。资源如何进入身体、沿什么路径运输、能否及时抵达组织,都与生物体的大小和结构密切相关。随着体型增大,运输距离、交换面积和资源需求之间的关系随之改变,代谢、生长及相关结构也必须协调调整。异速缩放(allometry)研究的,正是生物性状如何随体型变化而呈现非等比例的数量关系。
大量多细胞生物的数据表明,整体代谢率、生长率等指标随体重变化的标度指数,常聚集在 3/4 附近;相关速率、时间和结构的标度指数,则常呈现出以 1/4 为单位的规律。例如,整体代谢率常近似正比于 M3/4,单位体重的代谢率近似正比于 M-1/4,而血液循环时间、发育时间和寿命等时间尺度,在一定类群和条件下近似正比于 M1/4,其中 M 表示体重。这些关系并非适用于所有生物的固定法则,却提示我们:**体型对生命活动的影响,可能源于资源供给与运输系统的共同约束。代谢缩放理论(Metabolic Scaling Theory,MST)试图解释这些规律为何反复出现,以及它们何时、为何发生偏离。
图1用双对数坐标展示这些关系:横轴为体重的对数,纵轴为某一生物性状的对数。灰色虚线表示幂律关系 Y=Y0Mb,其中,标度指数 b 决定直线的斜率,描述性状随体重变化的快慢;归一化常数 Y0 则决定直线的垂直位置,反映给定参考体重下的性状水平。在MST中,前者与资源分配网络的有效维度及结构约束有关,后者则承载着生理策略、组织特性和资源分配方式等差异。即使两个类群具有相同的标度指数,也可能在相同体重下表现出截然不同的代谢强度。例如,被子植物与裸子植物的生物量生产可以具有相似的标度指数,而归一化常数的差异反映了它们在维管结构、叶片性状及资源分配上的不同;外温动物、中温动物与内温动物,也会因热生理策略不同,在相同体重下呈现不同的代谢水平。
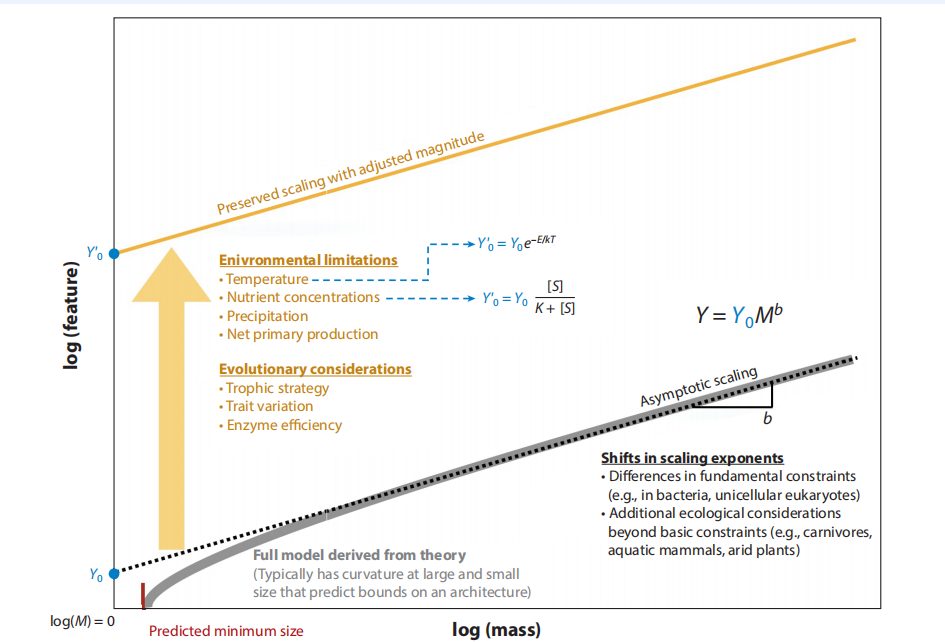
图1:MST中不同的变异轴
图1中的灰色实线进一步表明,真实的缩放关系未必始终是一条直线。在极小或极大的体型范围内,有限尺寸效应与资源运输网络的结构边界,会使双对数坐标下的关系出现弯曲。橙色线则展示了另一种变化:标度指数保持不变,整体水平发生移动。生理状态、生态条件及某些不改变网络结构的性状差异,可以使归一化常数由 Y0 变为 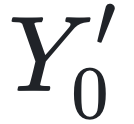 ,从而改变给定体重下的代谢水平。温度、营养浓度、降水和净初级生产力等环境条件,以及营养策略、性状变异和酶效率等因素,都可能参与塑造这些差异。
这些变化也说明,自然选择并不直接作用于幂律公式中的指数,而是作用于影响资源获取、运输、分配,以及生长、存活和繁殖的具体性状。标度指数是这些性状在共同约束下协调变化所涌现出的整体属性。因此,理解缩放规律,既要解释不同生物为何呈现相似的指数,也要追问它们在结构、生理和环境上的差异,如何改变缩放关系。
MST的目标,正是解释这些规律为何存在,并预测它们何时、以何种方式发生偏离。它从资源交换与内部运输的核心物理约束出发,推导生物性状、活动速率、时间尺度、生态动力学及生态系统通量之间的协调关系。扩展后的模型进一步纳入网络结构差异、有限尺寸效应、性状异质性和归一化常数的变化,以及不同尺度下占主导地位的约束机制,预测完整的缩放关系及其变化。由此,MST形成了一个连接生物体性状、体型、网络结构与能量通量的定量框架,并为从个体、种群到生物圈的跨尺度研究提供了可检验的预测。
整合异速表型:性状协变的网络结构
整合异速表型:性状协变的网络结构
所有生物都面临一个基本问题:如何从环境中获取资源,并将其送达需要的细胞和组织。在生命演化过程中,膜、肺、肠、叶、根、鳃和气管等交换结构反复出现。它们的形态与演化起源各不相同,却承担着相似的供给任务。资源摄取、内部运输、分配和终端交换的共同约束,使生物的活动速率、时间尺度与形态结构随体型发生协调变化。
随着体型增大,资源通常需要跨越更长的距离才能抵达组织,运输所需的时间、能量和材料成本也随之变化。与此同时,局部交换与生化过程仍须在可承受的生理范围内运行。如何在扩大运输网络的同时维持末端供给,是理解缩放关系的关键。
MST 将运输成本、体积限制和全身组织的供给需求纳入统一的数学框架。在这一框架下,参与资源获取、运输、分配和代谢的性状相互依赖,构成一个协变网络。对其中某一性状的调整,往往会牵动其他性状,从而在活动速率、时间尺度与形态结构之间形成可预测的数量关系。为区分物理约束、建模假设与可检验结果,MST 可以分为四个层次:
核心约束(core constraints):包括资源获取、内部运输、终端交换所涉及的物理阻力与分配成本,界定生物供给系统必须解决的基本问题。
简化假设(simplifying assumptions):包括对称分支、精确自相似、空间填充、终端单元大小不变、大网络极限和组织密度恒定等,将核心约束转化为可计算的模型。不同模型可以采用不同的假设组合。
进化准则(evolutionary criteria):规定自然选择在受约束的结构与功能组合中,倾向于提高哪些性能,例如提高运输效率或降低运输阻力。
派生预测(derived predictions):由上述约束、假设和准则共同推导出的结果,包括标度指数、归一化常数、缩放曲率、有限尺寸效应及性状之间的协变关系,可用于与观测数据进行比较。
MST 的四层架构,使研究者能够明确判断观测结果究竟挑战了理论的哪一部分。某项简化假设不符合实际,意味着需要重新审视如何将物理约束转化为模型;某项进化准则未获支持,则意味着需要检验所假定的选择压力。单个数据点偏离预测,并不足以否定整个框架;但如果网络结构、相关性状和环境条件均已明确,模型仍持续无法解释观测结果,就需要进一步检验其核心机制。区分不同层次的假设,是为了让理论接受更有针对性的检验。
图2展示了 MST 预测的三类性状协变网络,分别对应植物、哺乳动物心血管系统和动物呼吸系统。由于多个性状共同依赖体型及资源供给约束,理论可以预测它们如何协调变化,包括变化的方向与相对幅度。图中每个节点代表一种可观测的生理或形态性状,如叶面积、水力阻力、生长速率、代谢率、线粒体密度和血管分支比率;节点之间的连线则表示理论预测的协变关系。黑色连线表示正协变,即两个性状随体型同向变化;灰色连线表示负协变,即一个性状增加时,另一个性状相应降低。例如,整体代谢率随体重增加,而单位体重的代谢率通常下降,两者因而呈负向的标度关系。
对于植物,MST 可预测19个核心性状之间的171对关系;对于哺乳动物,30个性状则构成435对关系。理论检验由此从单一的“代谢率—体重”关系,扩展到多个性状之间相互关联的整套预测。
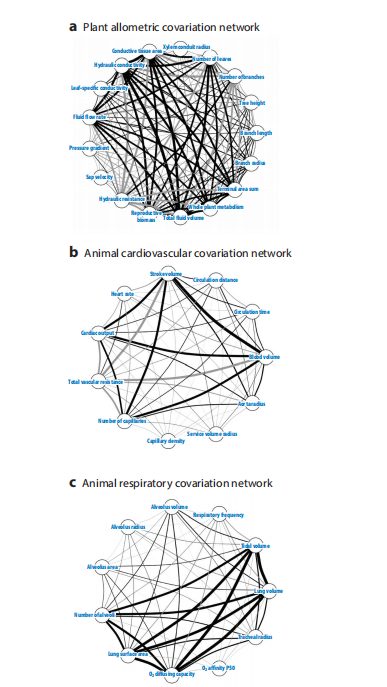
图2:基于MST,对动植物异速生长协变网络的预测结果
从网络分支的几何约束、资源运输的物理极限,以及特定模型中终端交换单元大小相对稳定等条件出发,MST 利用标度关系的传递性,推导多个变量之间的缩放关系。这意味着,生物性状并不能任意组合:物理约束限定了可行范围,自然选择则在这一范围内塑造结构与功能。看似繁多的性状变化,可能集中在少数相互关联的变化方向上,形成高维性状空间中的低维结构。
图3展示了这些约束如何从细胞延伸至生物圈。在细胞层面,代谢供给影响细胞活动、分子周转、生长、衰老及肿瘤动力学;在器官层面,血管与交换网络的几何结构,影响不同组织和器官的大小如何随体型变化;在个体层面,体型与网络结构共同塑造代谢率、生理性状之间的协变关系,以及生长和寿命等生活史时间尺度。进一步结合资源限制、竞争和种群更新等生态过程,这些依赖体型的速率可影响种群丰度、群落动态与能量通量,并在生态系统和生物地理尺度上,参与塑造生产力、总生物量及性状与活动速率的地理差异。图中的箭头强调,不同层级的生命过程,可以通过资源供给约束和依赖体型的速率联系起来。
在 MST 中,具体性状通过影响模型参数与约束条件,参与决定缩放关系,主要包括三条路径:
路径一:资源流(Resource Flow)。木质部导管直径、气孔导度、毛细血管密度和交换表面面积等性状,影响资源从环境进入代谢组织的通量。以植物为例,较宽的木质部导管通常具有更高的水力传导能力,但也可能伴随栓塞风险;导管结构的变化,体现了运输效率与水力安全之间的权衡。
路径二:网络架构(Network Architecture)。分支比率、导管锥度、路径长度、树冠形态和叶片分布等结构特征,决定资源分配网络如何占据空间,以及运输距离如何随体型变化。因此,分支结构的改变应当带来多个异速关系的联动,表现为株高、茎径、叶面积、水力阻力、生长和代谢之间的协调变化。这也为检验模型提供了比单个指数更丰富的依据。
路径三:归一化(Normalization)。组织密度、叶片氮含量、酶活性、线粒体密度和热生理策略等因素,可以改变给定体型下的生物活动速率。在不改变标度指数的情况下,这些差异体现为归一化常数的变化,从而解释为什么不同类群对体型具有相似的依赖关系,却表现出不同的代谢强度。
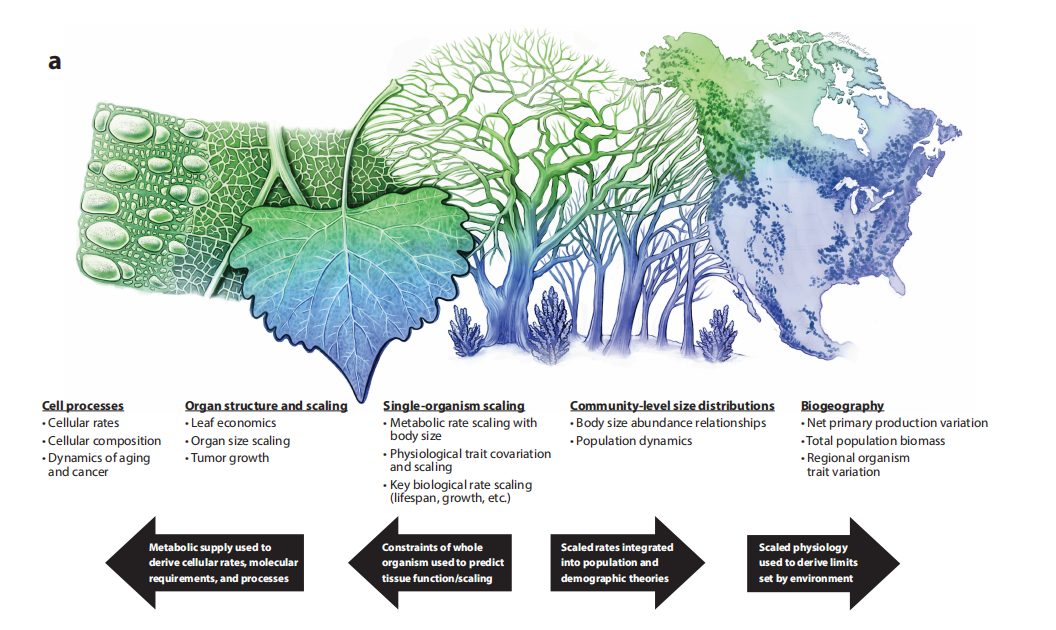
图3:MST如何在从细胞到生物地理学的不同组织层级间建立生物学结构与功能联系的示意图
图4给出了MST给出的预测,涵盖在动植物多种场景中的缩放法则,包括
b:细胞代谢率随生物体体重在体内变化,但细胞在体外培养时近似大小无关,说明移除约束带来缩放法则。
c:根呼吸随根质量系统缩放,草本和木本植物有各自拟合线。
d:豚鼠生长随时间遵循预测的个体发育轨迹。
e:美国最大树高的地理变异。
f:可存活肿瘤质量随总肿瘤质量缩放,把代谢供给约束扩展到病理性生长。
g:整株植物呼吸随植物质量缩放,跨越大体型差异。
h:大小依赖代谢贡献体型–种群丰度预测关系。
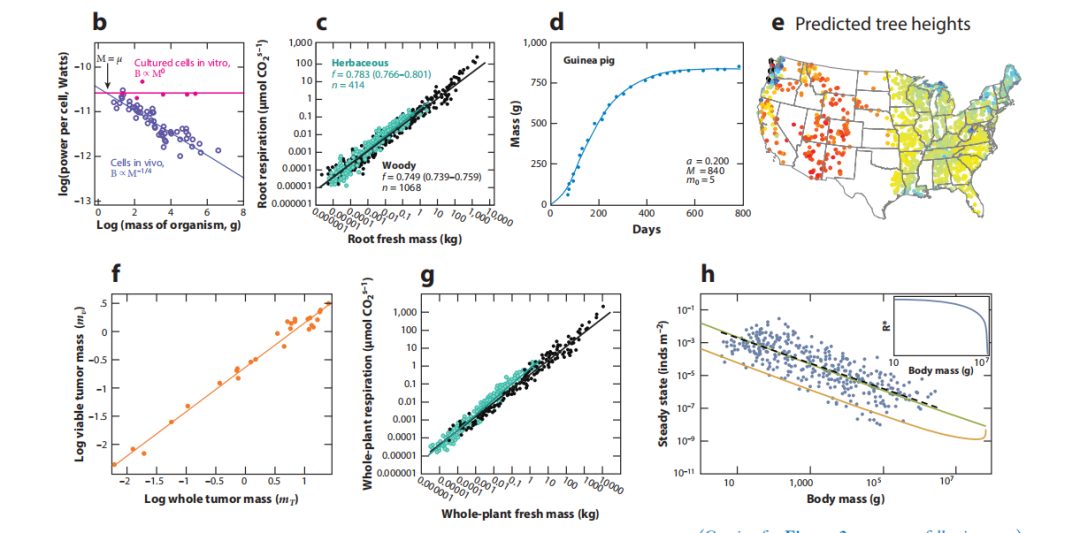
图4:基于MST预测的各种现象得到了实证数据验证
MST指出,若个体缩放变化,种群、群落、生态系统通量可随之改变;但向上传播需要额外生态假设,包括资源限制、竞争、死亡、补充、环境强迫。移除或改变供给约束应改变连锁性状和速率,如图4b所示。
扩展的 MST 如何预测不同生物之间的差异
扩展的 MST 如何预测不同生物之间的差异
反复出现的四分之三幂律,可以理解为生物在特定约束下实现高效资源运输的一类结果。尽管不同生物的资源交换结构与内部运输系统形态各异,它们都需要在体型增大、运输距离延长的同时,维持末端组织的有效供给。在一定的网络几何与运输优化条件下,这些共同需求使代谢率的标度指数趋近于 3/4。但当网络结构或主导约束发生变化时,缩放关系也会随之改变。
因此,检验 MST 的关键,在于能否根据独立测量的网络结构、资源分配和生活史特征,预测标度指数、归一化常数、曲率及性状协变的协调变化。在一类模型的假设条件下,代谢率的标度指数可写为 d/(1+d),其中 d 是资源分配系统的有效维度:三维系统对应 3/4,二维系统则对应 2/3。对于资源分配主要受二维几何约束的结构,偏离四分之三幂律便是理论可以预期的结果。只要能够测量相关结构并明确约束条件,就有可能据此推导标度关系。这体现了 MST 的生成性:几何结构与约束条件改变,模型预测也随之变化。
在微观尺度上,扩散、反应动力学和膜交换等过程可能取代分支运输网络,成为主导约束。相应地,原核生物可以表现出指数大于1的超线性代谢标度,单细胞真核生物则可能呈现接近线性或四分之三幂的关系。这些差异提示,跨尺度的统一解释,需要识别不同尺度下起主导作用的物理机制,并推导各自的缩放关系。
图5进一步展示了 MST 如何解释不同类群的差异。图5a比较了植物生物量生产、整株生物量、叶片生物量与液流等指标之间的关系。被子植物和裸子植物可以具有相似的标度指数,而归一化常数的差异,则反映出它们在维管结构、叶片性状和水力效率上的不同。图5b比较了不同动物类群的代谢率预测值与观测值,并展示外温动物、中温动物和内温动物的代谢率—体重关系:不同类群的曲线在垂直方向上发生移动,与其热生理策略和代谢强度的差异相对应。图5c将生活史理论与 MST 结合,考察生命周期内的能量消耗、资源分配和死亡风险等关系,包括终生代谢能量随体重的变化,以及植物年死亡率随基径的变化。这些例子共同说明,归一化常数能够反映性状、生理和生活史差异,同时保留不同类群共有的体型依赖关系。
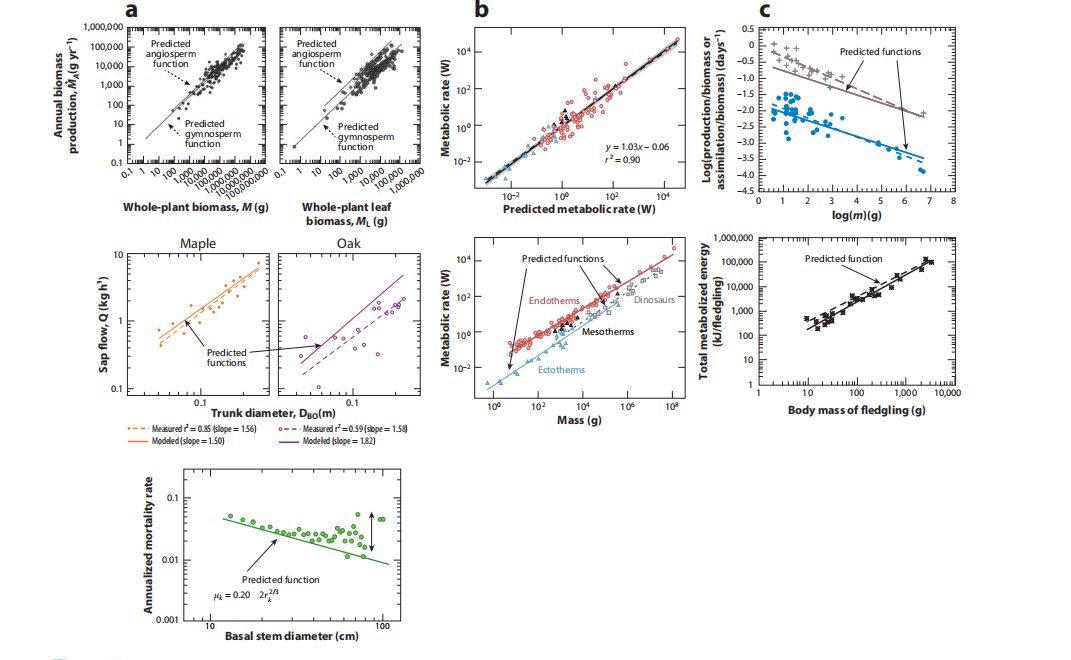
图5:代谢缩放理论预测来自性状变异、生态、生理策略和生活史差异。
借助 MST,研究者可以将三维重建与计算几何获得的结构信息输入模型,推导并检验新的缩放关系。图6a展示了小鼠肺部的支气管网络与被子植物的维管分支网络:前者输送气体并服务于气体交换,后者运输水分与养分。尽管功能和演化起源不同,它们都需要解决如何在三维空间中有效分配资源的问题。两者共有的层级分支与近似自相似结构,为理解跨类群的缩放规律提供了几何基础。
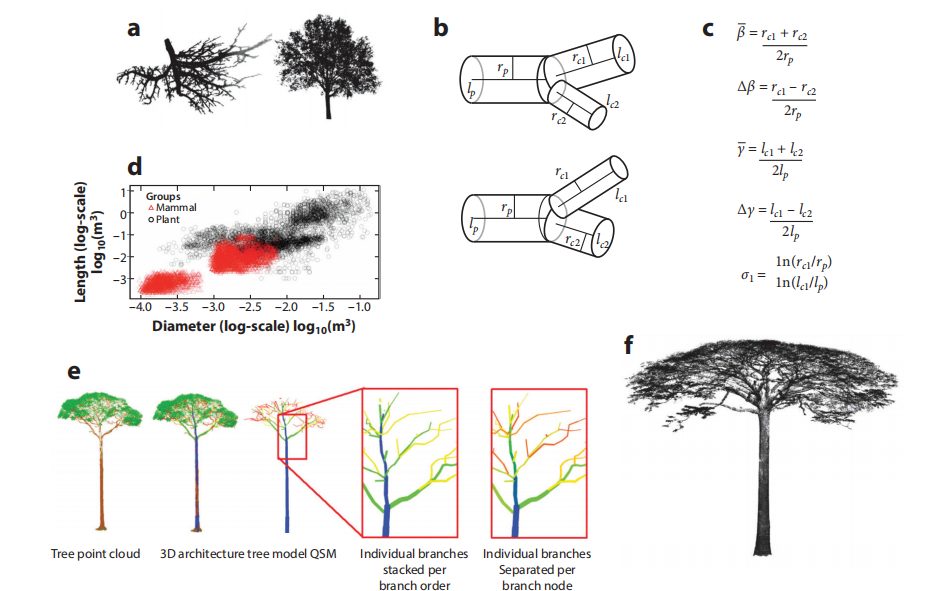
图6:代谢缩放理论如何跨越生命树的几何同构与结构化偏离
图6b将复杂网络拆解为可测量的分支单元,标出父分支(p)与两个子分支(c1、c2)的半径(r)和长度(l)。在此基础上,图6c进一步用计算几何方法描述真实网络中的不对称性与结构差异。通过将这些差异纳入模型,MST 可以放宽“完美分形”的简化假设,推导它们对缩放曲率和归一化常数的影响,使预测更贴近真实生物结构。
图6d展示了不同物种分支长度与直径之间的双对数标度关系。偏离经典幂律的观测结果,除了可能来自测量误差,也可能包含网络结构差异的信息。例如,干旱、风力或代谢需求等条件,可能通过影响分支结构改变缩放关系。这些偏离是否反映适应性变化,需要结合独立的结构测量与环境数据加以检验。
图6e和图6f以加蓬的一棵热带巨树为例,展示了从三维点云到分支结构参数的提取过程。研究者可以识别分支层级,并测量各节点处的分支半径与长度,进而估计整个网络的结构特征。高分辨率扫描由此将大型树木复杂的冠层转化为可量化的数据,为检验大体型条件下的网络约束与缩放预测提供了依据。
小结
小结
MST 将物理约束、生物体的结构与功能、生态学数据和进化过程纳入同一个预测框架,探讨资源供给如何连接性状、代谢与不同层级的生命活动。物理定律限定了生物结构与功能的可行范围,自然选择和演化历史则参与塑造这一范围内的多样性。
从这一视角出发,MST 既要解释标度关系为何常聚集在某些指数附近,也要解释它们为何发生变化,以及这些变化如何与网络结构、生理策略和环境条件相联系。幂律中的共性与偏离,都是理解生命多样性的线索。通过将结构测量、环境数据与模型预测相互对照,研究者可以进一步辨别:哪些规律源于共同约束,哪些差异反映适应性变化或演化历史,哪些波动可能来自随机过程与测量误差。
理论生态学读书会 生态学本身就是一种充满隐喻的、整体化的自然科学方法论,对人类社会的组织、社群、各类系统都提供了观摩自然界的“模型”和“理论”照鉴。理论生态学是理论中的理论、方法中的方法,因此对这一领域的熟悉和梳理,对更系统地走进生态学的思想宝库、熟练分析和研究工具,具有基础而重要的意义。分享理论生态学框架与前沿、对理论生态学进行祛魅和进一步发展其与相关领域的连接,是我们发起举办这次读书会的初衷。“生态学欢迎所有人”——人生而来源于大自然,生活在各种的生态系统之中,终将归宿于大自然,取材自然、问道天地,遵循和应用自然的秩序和规律。相信理论生态学的读书会会给所有参与者带来一次很有启示意义的学习和共研旅程,从方法论的角度深度理解生态系统更本质的规律和特征。 集智俱乐部联合北京林业大学大学副教授李周园,普利高津奖章得主、Towson大学Brian D. Fath教授以及北京大学理论生态学课题组博士研究生于越共同发起「理论生态学读书会」,旨在深入探讨理论生态学的基础思想与前沿进展,通过分享经典文献与最新研究,促进对生态学复杂性、共存机制及生态系统动态的理解,推动理论生态学与实际生态问题的连接与创新。
详情请见:探索理论生态学:洞察自然秩序之旅
推荐阅读
2. 幂律分布的数学机制--随机过程 v.s 优化原理|陶如意
3.物理学杂志·复杂:复杂信息层级结构的出现与生物系统的开放演化
4. 9900分可兑换“涌现”文化衫,报名任意读书会送299积分!
5. 集智学园精品课程免费开放,解锁系统科学与 AI 新世界
点击“阅读原文”,报名读书会
本文转载自微信公众号「集智俱乐部」,查看原文。版权归原作者所有,如有侵权请联系删除。